2026-11-03
-
-
2026-11-03
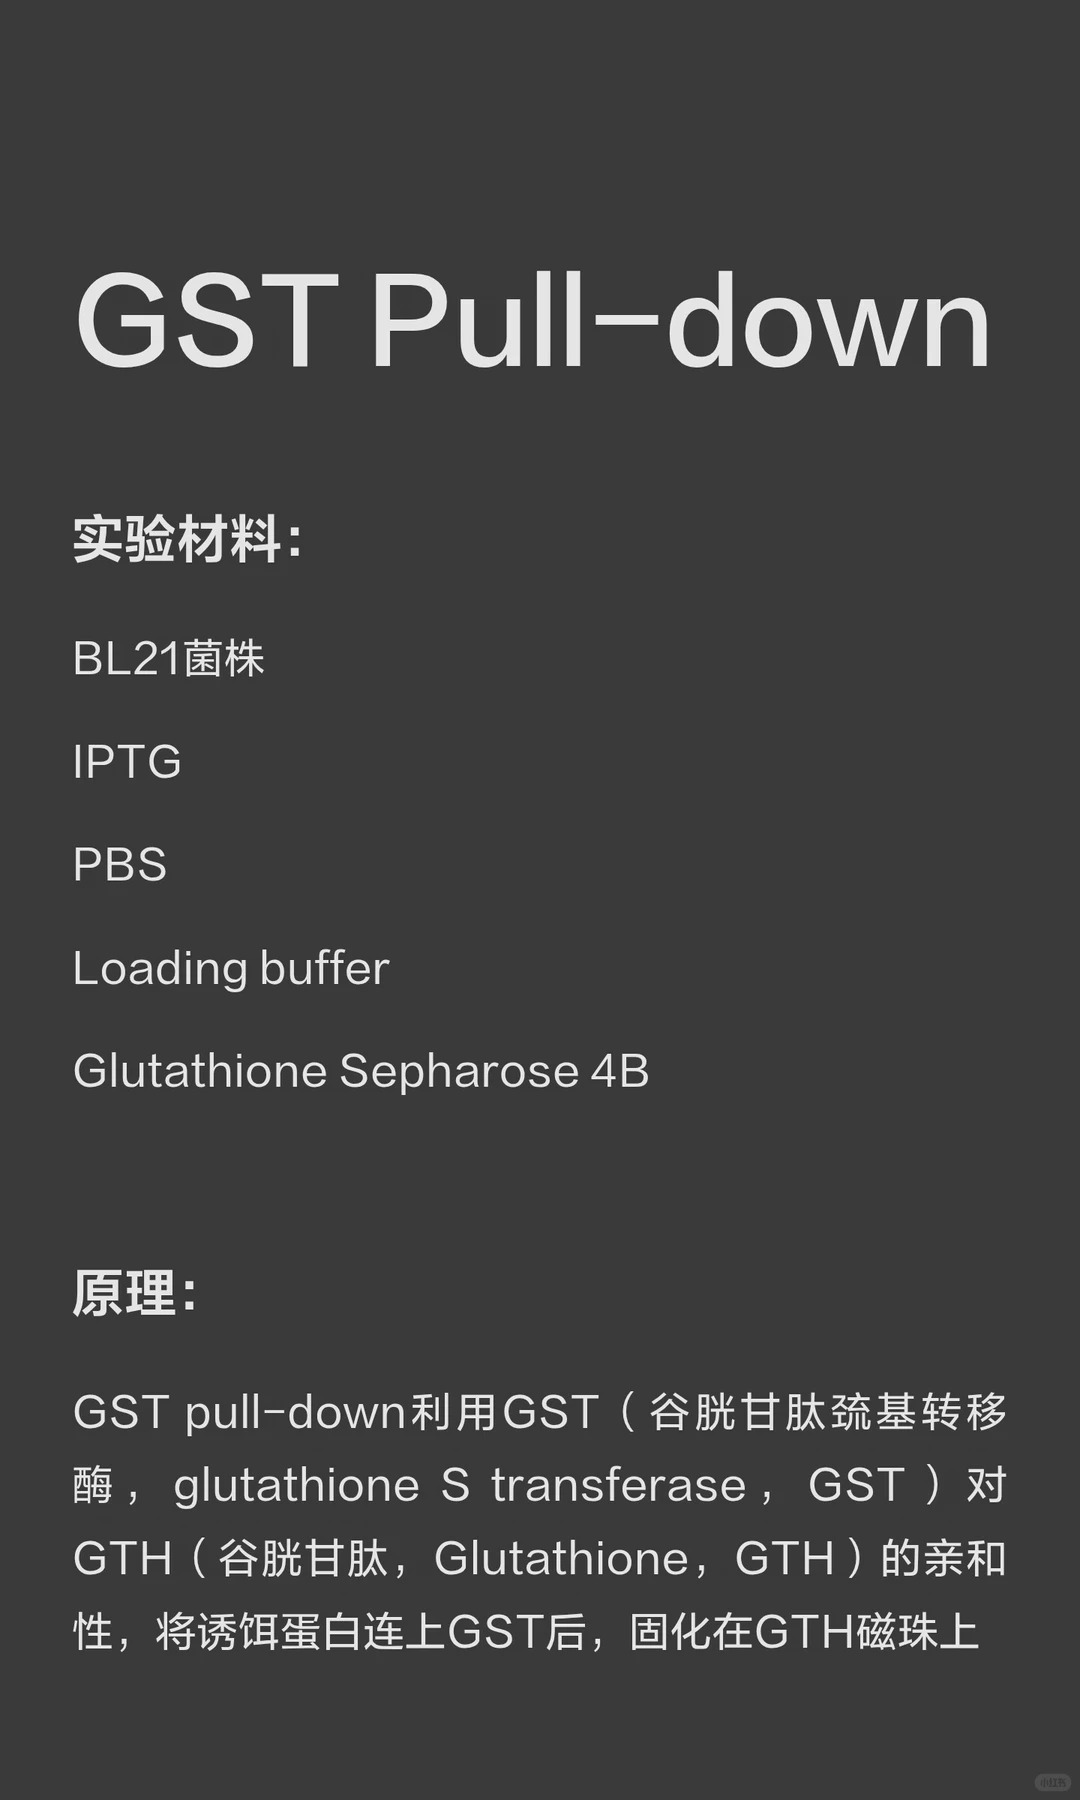
Pull-down 之后怎么做位点精确定位?截短体与点突变的完整设计思路
Pull-down 实验成功捕获到互作蛋白,只是回答了 “这两个蛋白可能存在相互作用”。真正的机制研究还需要继续追问:
-
2026-11-02
GST Pull-down 实验对照怎么设?理清假阳性,互作结果才可信
做蛋白互作验证,Pull-down 是非常经典的体外实验,常用来验证酵母双杂交初筛结果、确认两个蛋白的直接物理结合。很多小伙伴实验做完,WB 条带杂、背景高、结果说不清,审稿人第一句话就是:对照设置不全,无法区分特异性互作和非特异性吸附。
-
2026-11-02
转录因子 - 启动子互作课题路线怎么选?分场景技术方案详解
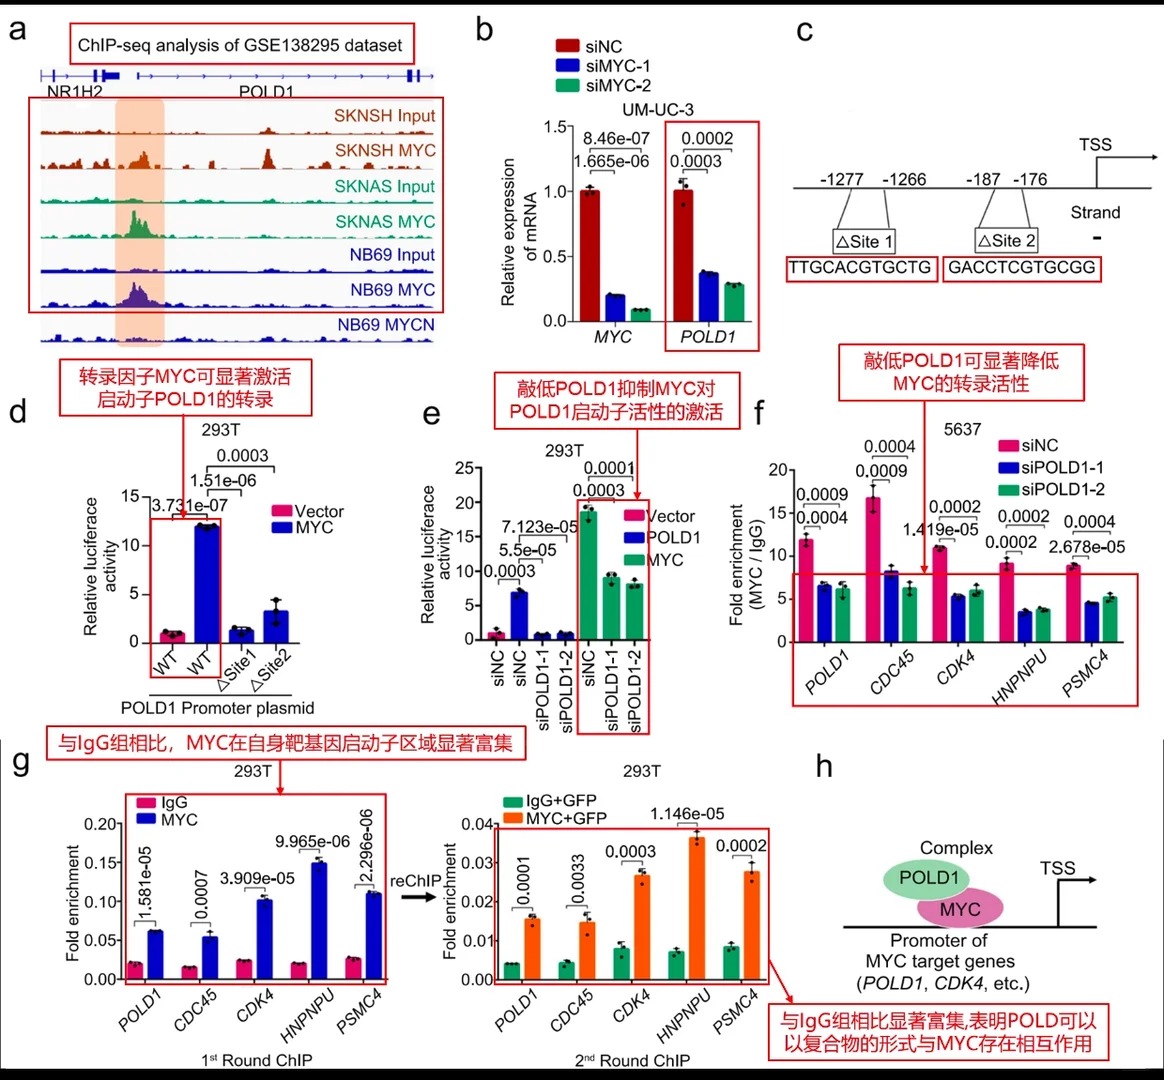
上一篇我们梳理了转录因子与启动子互作研究的完整证据链:从候选 TF 筛选、体外 EMSA 直接结合验证,到双荧光素酶元件定位、CUT&Tag/ChIP 体内验证,最后搭配遗传材料完成功能验证。 整套研究涉及 EMSA、酵母单杂交、DAP-seq、ChIP、CUT&Tag、双荧光素酶,
-
2026-11-02
启动子活性验证只是起点:转录因子 - 启动子互作,解锁基因上游调控密码
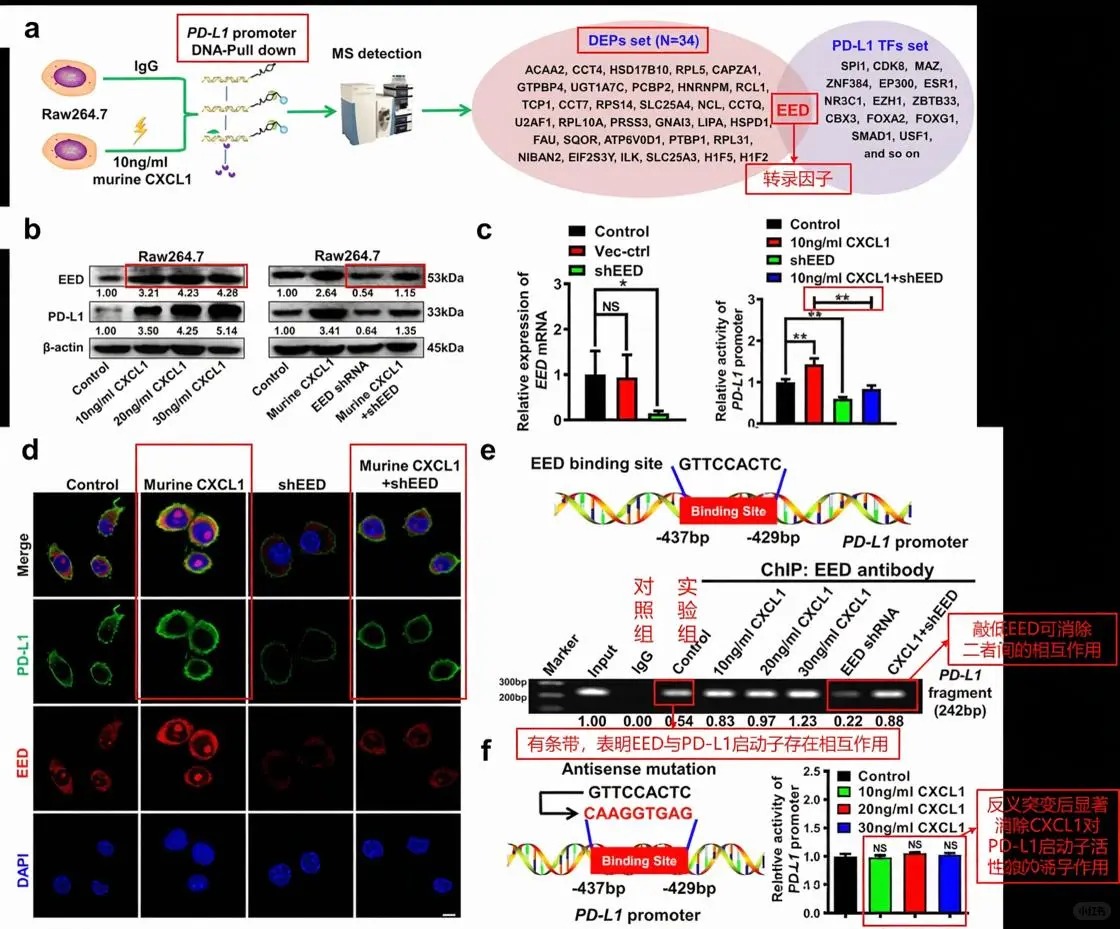
很多做植物分子的小伙伴都做过启动子顺式元件预测、GUS 染色、双荧光素酶启动子活性检测。通过 PlantCARE 预测启动子顺式作用元件,再借助 GUS 染色、双荧光素酶实验,我们可以确认:这段启动子具备转录活性,能够驱动下游基因表达。
-
2026-10-28
质粒转化热激为什么固定 42℃?37℃、45℃为什么不行?
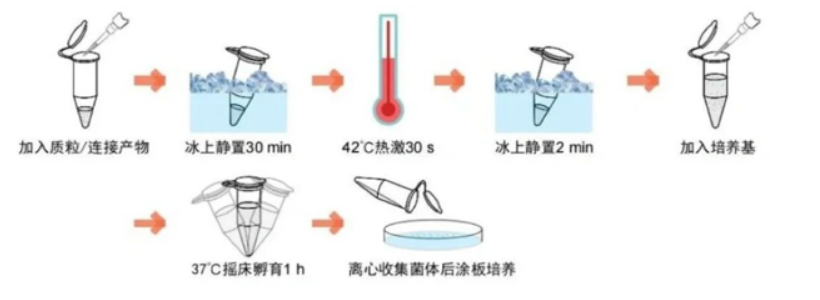
质粒转化为什么选择 42℃热激?本文讲解氯化钙感受态制备与热激原理,对比 37℃、45℃的弊端,理解转化关键控制点。普拉特泽生物提供载体构建、分子克隆、质粒构建服务。
-
2026-10-26
从 Y2H、BiFC 到 Co-IP、Pull-down,一篇看懂蛋白互作四件套
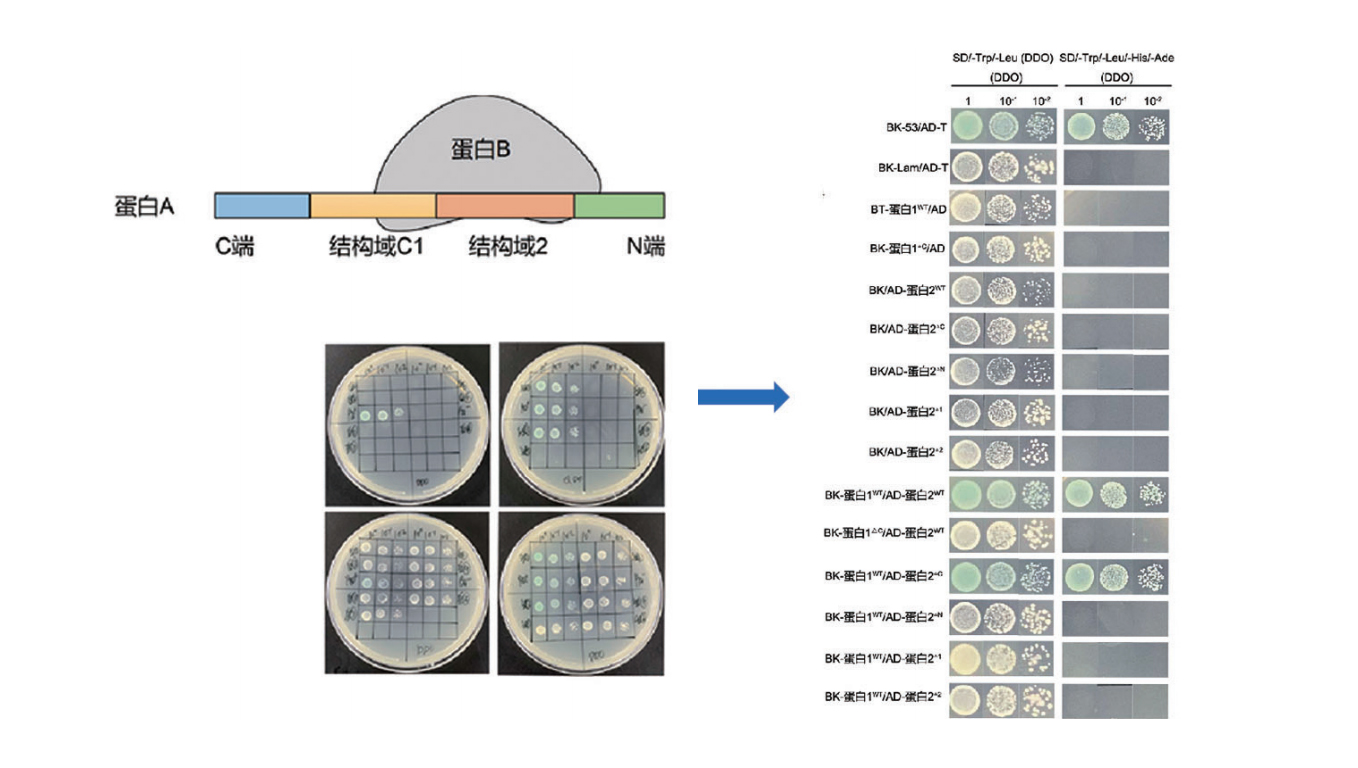
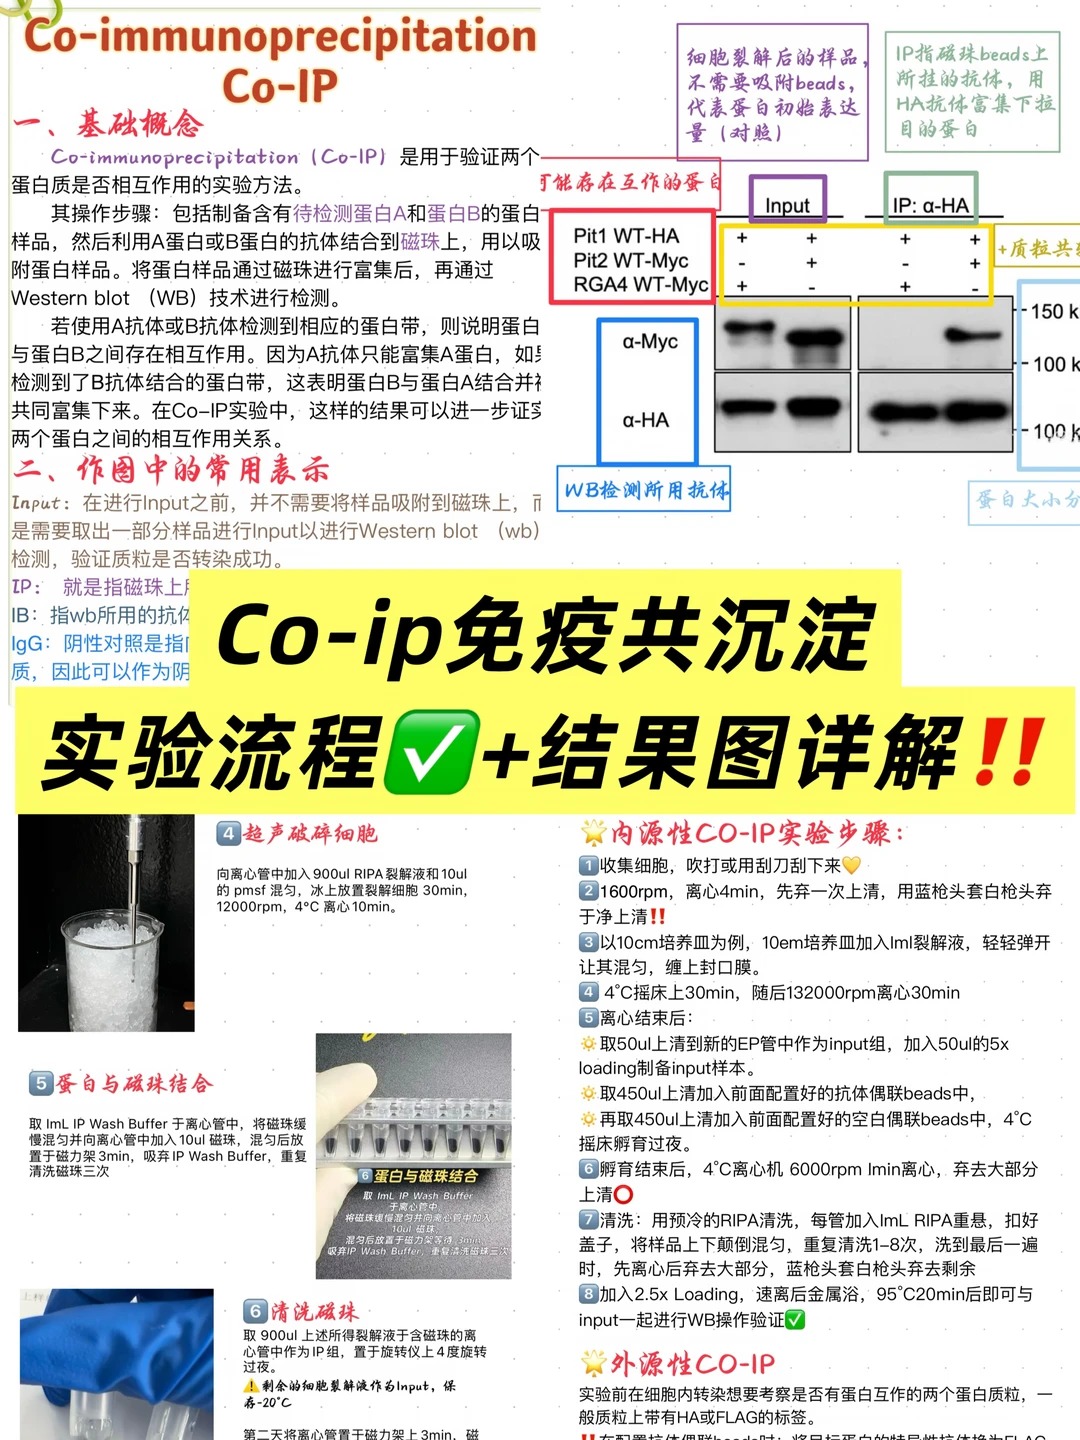
Y2H 看“在酵母里能不能互作”;BiFC 看“在活细胞里有没有互作信号、发生在哪里”;Co-IP 看“体内是不是在同一复合物里”;Pull-down 看“把蛋白单独拿出来以后,能不能直接拉住”。
-
2026-10-26
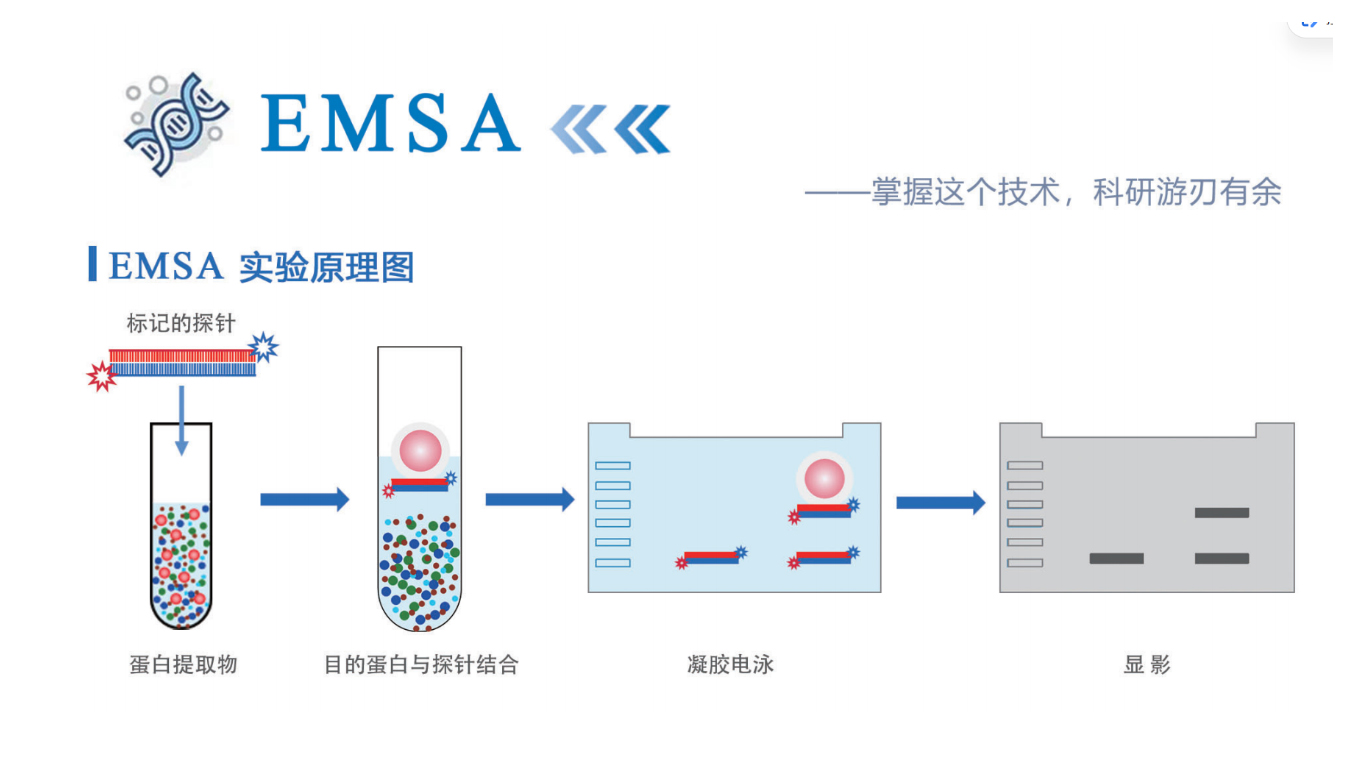
从 Y1H、EMSA 到 ChIP、Dual-LUC,一篇看懂 TF→靶基因证据链
第一次接触转录因子、启动子和顺式作用元件;在论文里经常看到 Y1H、EMSA、ChIP-qPCR、Dual-LUC,却不知道为什么要连续做四个实验;或者已经能认出实验名字,但结果图还是不会看、也分不清每个实验到底能证明到哪一步的人。
-
2026-10-19
别再把Co-IP阳性写成直接互作:多种蛋白互作技术怎么选?
蛋白质很少独自工作。受体接收到信号后,需要招募接头蛋白;激酶要找到合适的底物;转录因子也常与辅因子组成复合物。蛋白之间何时相遇、在哪里相遇、结合多久,构成了细胞信号调控网络的基础。一旦这些关系发生变化,通路可能异常激活或失活,并参与肿瘤、炎症、代谢疾病和退行性病变等病理过程。
-
2026-10-18
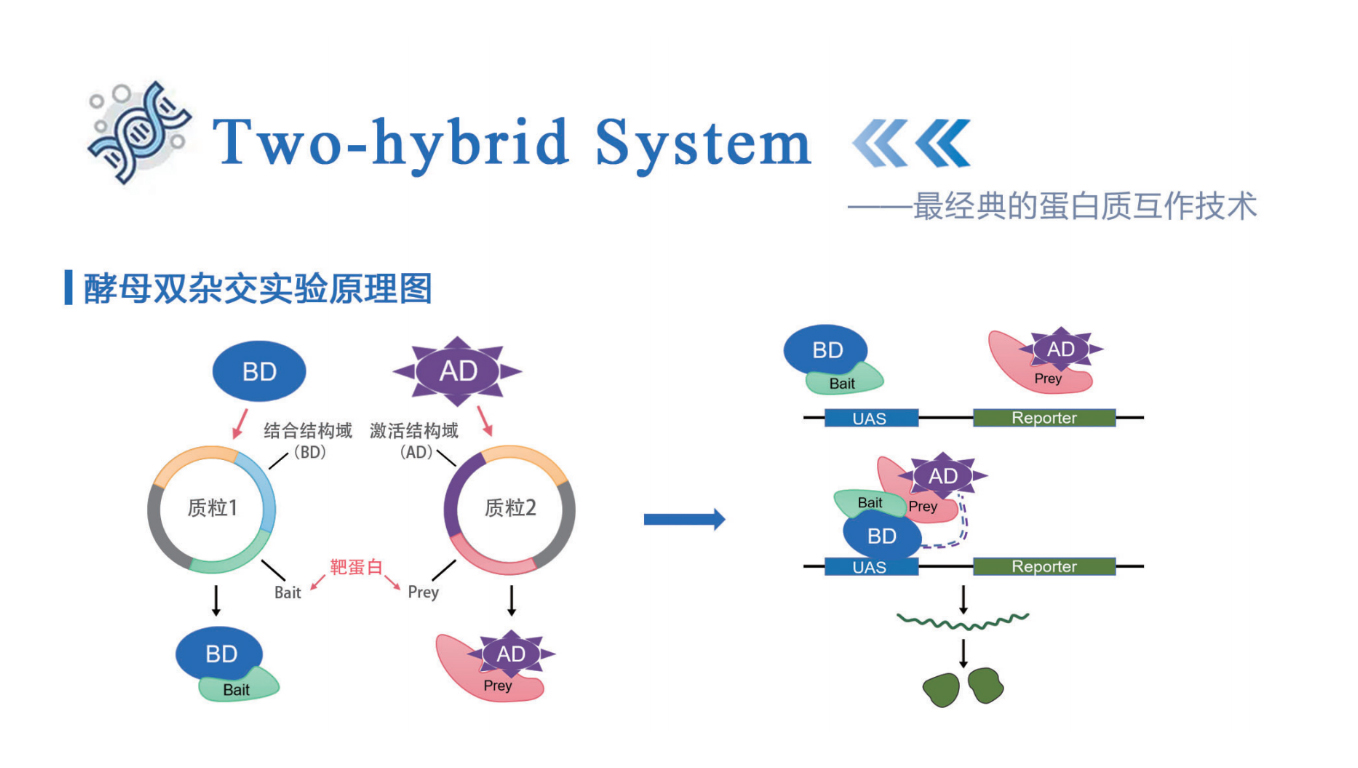
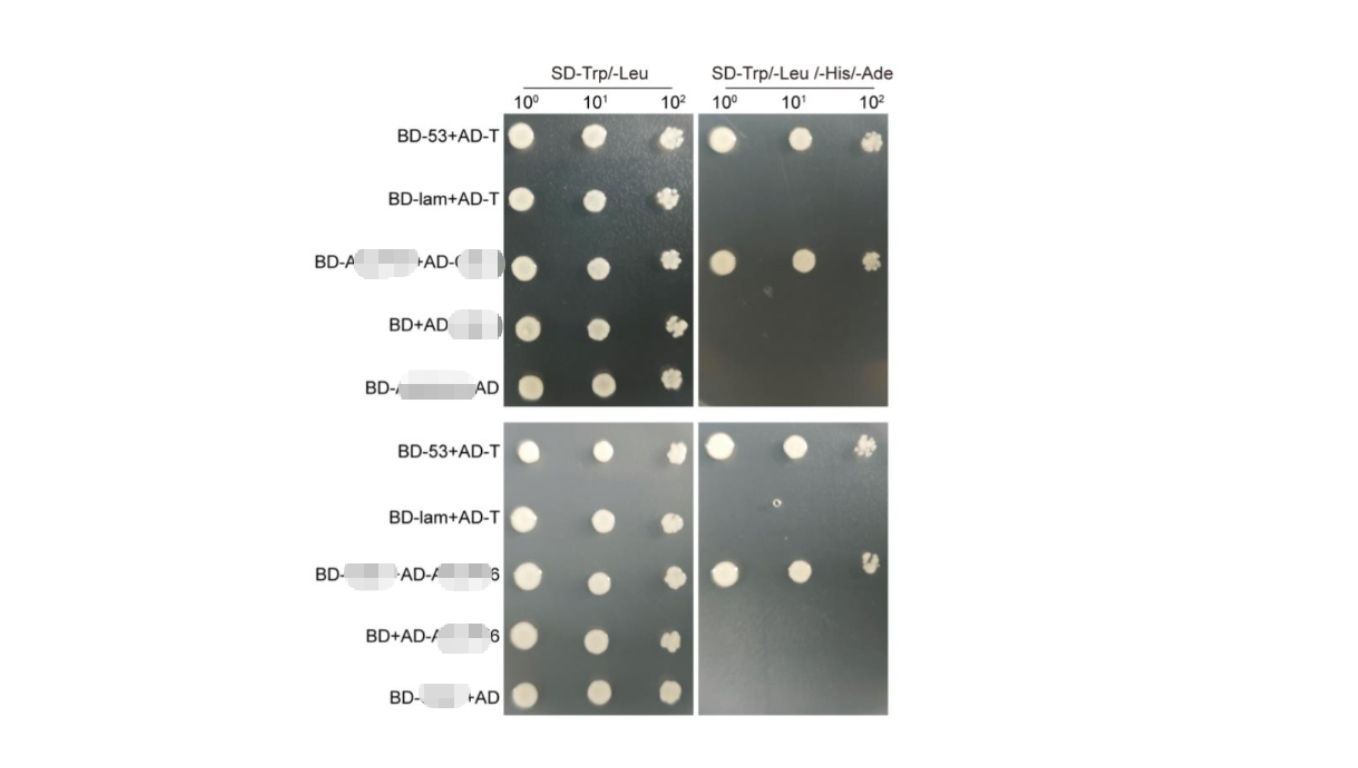
酵母双杂交实验
蛋白与蛋白之间如何 “牵手互作”,是解析细胞信号通路、挖掘靶标分子的关键问题。酵母双杂交作为经典的体内互作筛选技术,至今仍是科研人挖掘未知互作蛋白、验证蛋白结合关系的常用利器。
-
2026-10-18
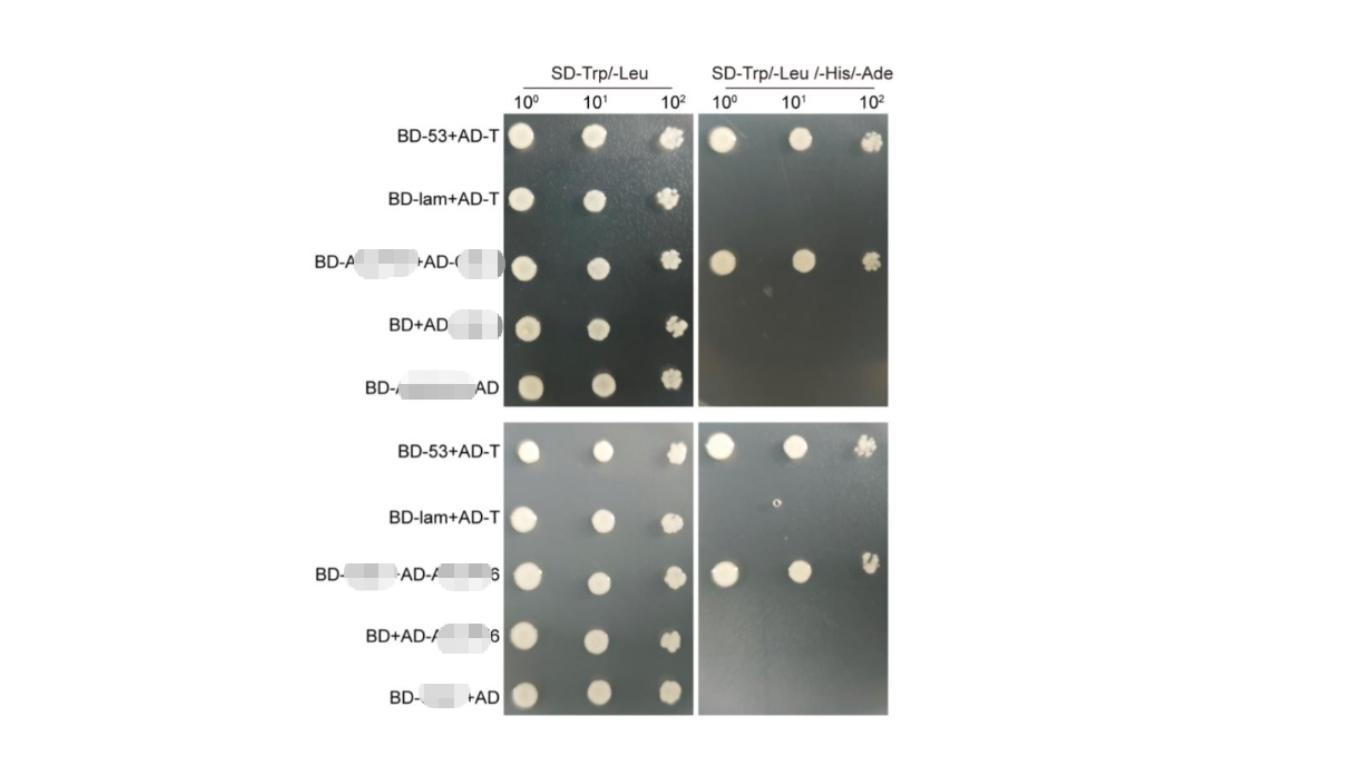
酵母单杂实验中的载体功能
-
2026-10-18
酵母杂交实验介绍